
Гликолатный цикл (фотодыхание)
Еще в 1779 г. Я. Ингенхауз, проверявший результаты опытов Д. Пристли, доказывавшего, что на свету зеленые растения улучшают воздух, испорченный горением, обнаружил, что иногда днем, при очень большой освещенности и температуре, растения выделяют С02 и поглощают 02. Я. Ингенхауз решил забыть об этих странных для него результатах и объявил, что Д. Пристли был прав. Это доказывало и большинство из его собственных 500 опытов. Вспомнили об этом феномене только через полтора века, когда в 1972 г. Э. Толберт (США) повторно «открыл» этот процесс. Процесс назвали по тину газообмена, активирующегося на свету в зеленых клетках, фотодыханием.
Изучение фотодыхания показало, что большую роль в этом процессе играет РуБФ-карбоксилаза. Если мало двуокиси углерода и много кислорода, то она может присоединять к рибулозо-1,5-бисфосфату не углекислый газ, а кислород, т.е. этот фермент выполняет не только карбоксилирующую, но и оксигенирующую функцию, поэтому к названию фермента рибулезо- бисфосфат-карбоксилаза прибавилось еще оксигеназа (РуБисКО). Кислород и С02 ведут себя как субстраты, конкурирующие друг с другом за взаимодействие с РуБисКО, т.е. кислород ингибирует карбоксилазную, а С02 — оксигеназную функцию этого фермента.
Присоединение кислорода к молекуле РуБФ приводит к тому, что вместо двух молекул ФГК образуется одна молекула ФГК и одна молекула фос- фогликолата (рис. 4.22). Выходя из хлоропласта с помощью специального переносчика, расположенного во внутренней мембране, фосфогликолат при участии фосфогликолатфосфатазы дефосфорилируется и превращается в гликолат, который поступает в специальную органеллу — пероксисому. В пероксисоме гликолат реагирует с поглощаемым клеткой кислородом; в результате образуются глиоксилат и перекись водорода. Реакцию катализирует гликолатоксидаза. Перекись водорода и глиоксилат — токсичные вещества. Вредное влияние перекиси связано с тем, что она может окислять
SH-группы ферментов цикла Кальвина, что вызывает их инактивацию, поэтому она тотчас же разлагается каталазой на воду и кислород, который выделяется в атмосферу. Глиоксилат тоже является сильным окислителем, который может ингибировать РуБисКО. Глиоксилат в результате реакции трансаминирования, идущей при участии глиоксилатглицинаминотрансфе- разы, превращается в глицин, транспортирующийся в митохондрию. Здесь из двух молекул глицина при участии серинглиоксилатаминотрансферазы синтезируется одна молекула серина, образуются С02, аммиак и восстанавливается НАД. С02 или выделяется в атмосферу, т.е. теряется для растения, или используется в С3-цикле. Образовавшийся НАДН может включиться в электронтранспортную цепь дыхания (см. гл. 5), что приводит при его окислении к синтезу АТФ, или уходит из митохондрии для использования в других компартментах клетки.
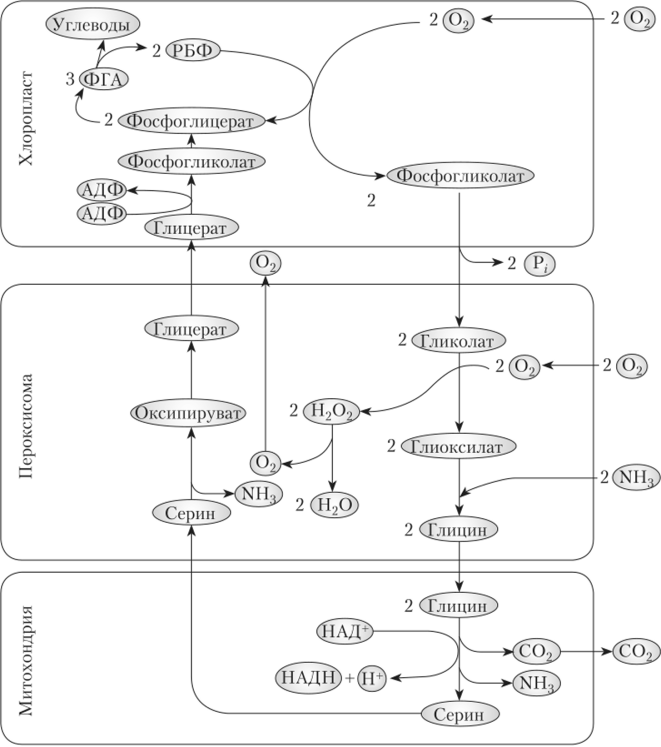
Рис. 4.22. Гликолатный цикл фотосинтеза
Серин транспортируется из митохондрии в пероксисому, где после дезаминирования превращается в гидроксипируват, который потом восстанавливается при участии глиоксилатредуктазы в глицерат за счет НАДН. Гли- цсрат транспортируется в хлоропласт, где фосфорилируется за счет АТФ в присутствии глицераткиназы, и образуется ФГК. ФГК является конечным продуктом этого цикла. Она может поступить в С3-цикл для регенерации РуБФ или использоваться для синтеза сахарозы или крахмала.
Гликолат считается первичным продуктом этого цикла, поэтому цикл превращения его в триозофосфат (ФГК) назвали гликолатным.
Таким образом, более поздние исследования показали, что обнаруженное Я. Ингенхаузом выделение зелеными клетками углекислого газа и поглощение кислорода при освещении — это еще один цикл фотосинтеза со следующими особенностями:
- - С02 образуется во время превращения двух молекул глицина в серин;
- - кислород расходуется для синтеза гликолата и глиоксилата. Кроме того, если образующийся при декарбоксилировании глицина в митохондриях НАДН окисляется, то потребление кислорода увеличивается;
- - во время этого цикла, как и при дыхании, поглощается кислород и выделяется углекислый газ;
- - в течение цикла в больших количествах выделяется NH4, который используется для аминирования кетоглутарата, в результате образуется глутамат, причем скорость фиксации NH| при фотодыхании в 5—10 раз больше, чем скорость его фиксации в процессе ассимиляции нитрата (см. параграф 6.2);
- - ФГК может использоваться для синтеза сахарозы или крахмала.
Реакции гликолатного цикла происходят в хлоропластах, псроксисомах
и митохондриях. Основной органеллой считается пероксисома, так как именно в ней находятся главные ферменты этого цикла: гликолатокси- даза, каталаза и глиоксилатредуктаза. Митохондрии играют важную роль в этом цикле, так как в них находятся ферменты, с помощью которых происходит декарбоксилирование глицина с образованием серина и выделением С02. Цикл начинается и кончается в хлоропластах. В хлоропластах находятся РуБисКО и глицераткиназа. В клетке эти органеллы примыкают друг к другу, что также подчеркивает их функциональную зависимость (рис. 4.23). Таким образом, можно сделать важный вывод: в клетке органеллы взаимодействуют друг с другом, следовательно, необходим интенсивный транспорт веществ из одной органеллы в другую. С помощью этого цикла азот переносится из пероксисомы в митохондрию. Обмен метаболитами между участвующими в фотодыхании хлоропластами, пероксисо- мами и митохондриями осуществляется транслокаторами во внутренней мембране хлоропластов или митохондрий, обмен веществ происходит благодаря простым поринам в мембране пероксисом, которые представляют собой каналообразующие белки, выполняющие неизбирательный перенос низкомолекулярных соединений.
В течение гликолатного цикла происходит потеря С02, поглощенного в С3-цикле. Если цикл идет 10 раз, то из каждых 10 молекул РуБФ, образовавшихся в С3-цикле, одна молекула разрушается:
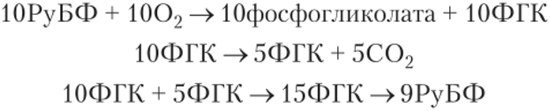
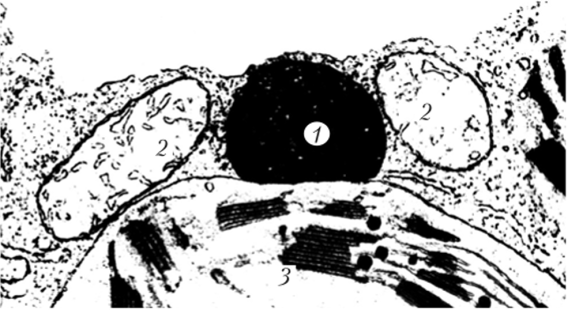
Рис. 4.23. Расположение хлоропласта, пероксисомы и митохондрии в клетке:
1 — пероксисома; 2 — митохондрия; 3 — хлоропласт
В результате у С3-растений потери сухой массы составляют от 15 до 50%. Последующие опыты показали, что если С3-растения, например некоторые виды фасоли, выращивать при пониженной концентрации кислорода, то их сухая масса увеличивается в 1,5—2 раза. Однако у С4-растений, например у кукурузы, увеличения прироста сухой массы в этих условиях не происходит. Поэтому возник вопрос, у всех ли растений есть гликолатный цикл. Было доказано, что у С3-растений и CAM-растений он есть, но у САМ- растений устьица днем закрыты, поэтому С02 не выделяется в атмосферу и этот цикл трудно обнаружить.
Однозначного ответа на вопрос о наличии гликолатного цикла у С4-растений пока нет. Одни исследователи считают, что у С4-растений гликолатный цикл происходит, так как в клетках есть все необходимые ферменты, да и цикл выполняет важные функции в растительном организме. Однако у этих растений гликолатный цикл идет с небольшой скоростью, что объясняется наличием РуБФ-карбоксилазы (оксигеназы) только в клетках обкладки и гем, что образующийся в гликолатном цикле С02 не выделяется в атмосферу, а вновь используется в фотосинтезе. Низкую интенсивность гликолатного цикла у С4-растений объясняют еще тем, что у них в клетках обкладки, которые содержат РуБФ-карбоксилазу, высокая концентрация С02. В основных клетках мезофилла этого фермента нет.
Сторонники другой точки зрения считают, что у С4-растений гликолатный цикл подавлен из-за недостатка кислорода в клетках обкладки. Действительно, в этих клетках не происходит фотоокисление воды из-за отсутствия в их хлоропла- стах второй фотосистемы, а поступление атмосферного кислорода затруднено тем, что клетки обкладки расположены в глубине листовой пластинки и между ними почти нет межклетников. Кроме того, эти растения не увеличивают сухую массу при уменьшении концентрации кислорода. У них очень высокая продуктивность. Так как интенсивно идущий гликолатный цикл может сильно снизить продуктивность С3-растений, то некоторые селекционеры считают важной задачей выведение
сортов сельскохозяйственных растений, у которых этот процесс подавлен. Удачные опыты проведены с райграсом.
Некоторые исследователи предполагают, что у С4-растений гликолатный цикл функционирует только в условиях водного дефицита, вызывающего закрывание устьиц и снижение концентрации углекислого газа в листе.
В настоящее время гликолатный цикл рассматривают как процесс, выполняющий важные функции в растительном организме. Во-первых, этот цикл, как и другие циклы фотосинтеза, является источником промежуточных веществ для различных синтезов. Во-вторых, гликолатный цикл играет важную роль в образовании таких аминокислот, как серин и глицин, т.е. связан с азотным обменом растения. В-третьих, почти доказано, что при образовании серина из глицина восстанавливается митохондриальный НАД, при окислении которого образуется АТФ. И, наконец, в-четвертых, появились данные, согласно которым избыток продуктов С3-цикла увеличивает скорость гликолатного цикла, а их недостаток усиливает интенсивность С3-цикла. Был проделан такой опыт. Одинаковые растения хлопчатника разделили на две группы. У растений первой группы удалили половину листьев, а у растений второй — половину плодов. В результате у растений первой группы листья должны были кормить большее количество развивающихся коробочек, а у растений второй группы — меньшее количество. Оказалось, что, несмотря на одинаковые условия, у растений первой группы увеличилась интенсивность С3-цикла, а у растений второй группы — гликолатного цикла. Следовательно, соотношение гликолатного и С3-цикла помогает поддерживать гомеостаз в растительном организме и регулирует эпигенез[1]. Эпигенез (от греч. epi — после и genesis — происхождение) — развитие организма, осуществляемое в результате ряда новообразований.
Гликолатный цикл — это дополнительная защита от образования АФК. Когда при недостатке воды и закрытых устьицах потребляется меньше С02, а сильное освещение способствует интенсивному образованию АТФ и НАДФН, парциальное давление кислорода высокое, фотодыхание устраняет 02, АТФ и НАДФН и способствует образованию С02, чем обеспечивает нормальный ход С3-цикла. В связи с этим можно предположить, что в процессе эволюции гликолатный цикл возник как защита клетки от все увеличивающейся в атмосфере концентрации кислорода, выделяемого в процессе фотосинтеза.
Авторы: Кузнецов Владимир, Дмитриева Галина
- [1] См.: Мокронос.ов А. Т. Фотосинтетическая функция и целостность растительного организма. М.: Наука, 1983.
